
Характеристика основных этапов дыхания у человека
Основными этапами дыхания у человека есть вентиляция легких, газообмен в легких, транспортировки газов, газообмен в тканях и тканевое дыхание.
Вентиляция легких - обмен воздуха между внешней средой и альвеолами легких, достигается ритмическими дыхательными движениями - вдохом и выдохом. Дыхательный аппарат человека составляют: а) грудная клетка с внешними и внутренними межреберные мышцы, которые приводят ее в движение; б) диафрагма; в) легкие; г) вспомогательные инспираторные (вдыхая) мышцы: большие и малые грудные, трапециевидный, ромбовидный и др.; д) вспомогательные экспираторных (выдыхая) мышцы: брюшные.
Вдох - активный процесс, обеспечивающий увеличение грудной клетки. Во время спокойного вдоха межреберные внешние мышцы сокращаются и поднимают ребра, диафрагма сокращается, становится плоской и опускается вниз. При этом объем грудной полости увеличивается, давление в легких становится меньше атмосферного, и воздух поступает в легкие. При глубоком вдохе происходит одновременное сокращение межреберных мышц, диафрагмы, а также некоторых мышц грудной клетки и плечевого пояса. Выдох - пассивный процесс, который приводит к уменьшению грудной клетки. При спокойном выдохе межреберные внешние мышцы расслабляются и ребра опускаются вниз, диафрагма расслабляется и становится выпуклой. Благодаря этому объем грудной клетки уменьшается, давление в легких становится больше атмосферного и воздух выходит из легких. При глубоком вдохе происходит сокращение внутренних межреберных мышц и мышц брюшной стенки.
Дыхательные движения регулируются дыхательным центром, который размещен в продолговатом мозге. В нем есть центр вдоха и выдоха, которые и обеспечивают ритмичную смену дыхательных движений. Частота дыхательных движений зависит также от того, сколько углекислого газа в крови.
Различают брюшной и грудной типы дыхания в зависимости от того, какие мышцы преобладают в акте выдоха (диафрагма или межреберные). Эффективным считают брюшной тип дыхания, потому что он обеспечивает более глубокую вентиляцию легких. Тип дыхания зависит от пола (у мужчин преобладает брюшной тип дыхания), профессии и возраста.
Количественным показателем вентиляции легких является минутный объем дыхания, то есть количество вдыхаемого и выдыхаемого течение одной минуты. Определяется как произведение дыхательного объема и частоты дыхательных движений. В покое МОД для взрослого человека равен: ХОД = 0,5 л × 14 / мин = 7 л / мин. Не всё воздуха, вдыхает человек, участвует в вентиляции легких. Часть его (около 140 мл) задерживается в дыхательных путях и влияет на состав вдыхаемого и выдыхаемого воздуха (объем мертвого пространства ).
Обмен газов в легких. Легкие представляют собой герметичные мешки, соединенные с трахеей с помощью крупных воздухоносных путей - бронхов. Атмосферный воздух через носовую и ротовую полость проникает в гортань и далее в трахею, после чего разделяется на два потока, один из которых идет к правому легкому, другой к левому (рис. 20). Трахея и бронхи состоят из соединительной ткани и каркаса из хрящевых колец, которые не позволяют этим трубкам перегибаться и перекрывать воздухоносные пути при различных изменениях положения тела. Войдя в легкие, бронхи разделяются на множество ответвлений, каждое из которых вновь делится, образуя так называемое «бронхиальное дерево». Самые тонкие веточки этого «дерева» называются бронхиолами, и на их концах располагаются легочные пузырьки, или альвеолы (рис. 21). Количество альвеол достигает 350 млн., а их общая площадь - 150 м 2 . Именно эта поверхность и представляет собой площадь для обмена газами между кровью и воздухом. Стенки альвеолы состоят из одного слоя эпителиальных клеток, к которому вплотную подходят тончайшие кровеносные капилляры, также состоящие из однослойного эпителия. Такая конструкция благодаря диффузии обеспечивает сравнительно легкое проникновение газов из альвеолярного воздуха в капиллярную кровь (кислород) и в обратном направлении (углекислый газ). Этот газообмен происходит в результате того, что создается градиент концентрации газов (рис. 22). Находящийся в альвеолах воздух содержит относительно большое количество кислорода (103 мм рт. ст.) и малое количество углекислого газа (40 мм рт. ст.). В капиллярах, наоборот, концентрация углекислого газа повышена (46 мм рт. ст.), а кислорода понижена (40 мм рт. ст.), поскольку в этих капиллярах находится венозная кровь, собранная уже после того, как она побывала в тканях и отдала им кислород, получив взамен углекислый газ. Кровь по капиллярам протекает непрерывно, а воздух в альвеолах обновляется при каждом вдохе. Оттекающая от альвеол обогащенная кислородом (до 100 мм рт. ст.) кровь содержит сравнительно мало углекислого газа (40 мм рт. ст.) и вновь готова к осуществлению тканевого газообмена.
Рис. 20. Схема строения легких (А) и легочных альвеол (Б)
А: ] - гортань; 2 - трахея; 3 - бронхи; 4 - бронхиолы; 5 - легкие;
Б: 1 - сосудистая сеть; 2, 3 - альвеолы снаружи и в разрезе; 4 -
бронхиола; 5 - артерия и вена
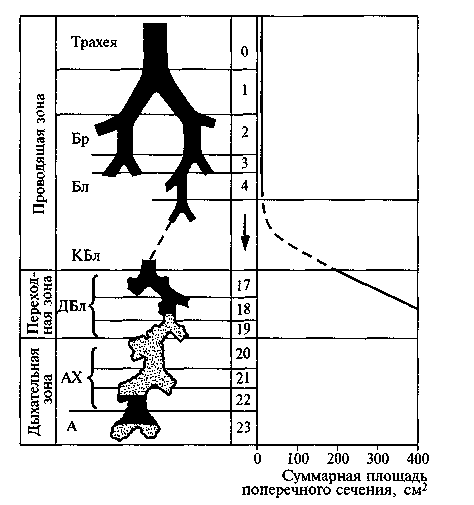
Рис. 21. Схема ветвления воздухоносных путей (слева). В правой части рисунка приведена кривая суммарной площади поперечного сечения воздухоносных путей на уровне каждого ветвления (3). В начале переходной зоны эта площадь начинает существенно возрастать, что продолжается и в дыхательной зоне. Бр - бронхи; Бл - бронхиолы; КБл - конечные бронхиолы; ДБл - дыхательные бронхиолы; АХ - альвеолярные ходы; А - альвеолы
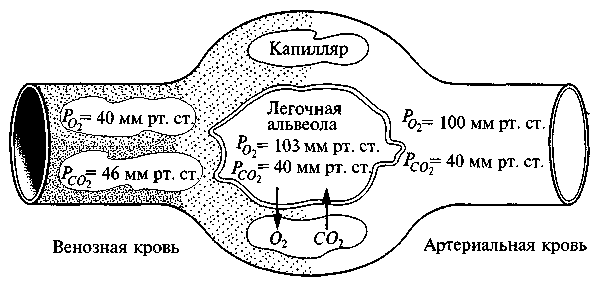
Рис. 22. Обмен газов в легочных альвеолах: через стенку легочной альвеолы О 2 вдыхаемого воздуха поступает в кровь, а СО 2 венозной крови - в альвеолу; газообмен обеспечивается разностью парциальных давлений (Р) СО 2 и О 2 в венозной крови и в полости легочных альвеол
Чтобы мельчайшие пузырьки - альвеолы - не спадались во время выдоха, их поверхность изнутри покрыта слоем специального вещества, вырабатываемого легочной тканью. Это вещество - сурфактант - уменьшает поверхностное натяжение стенок альвеол. Обычно оно вырабатывается в избыточном количестве, чтобы гарантировать максимально полное использование поверхности легких для газообмена.
Диффузионная способность легких. Градиент концентраций газов по обе стороны альвеолярной стенки является той силой, которая заставляет молекулы кислорода и углекислого газа диффундировать, проникать сквозь эту стенку. Однако при одном и том же атмосферном давлении скорость диффузии молекул зависит не только от градиента, но и от площади соприкосновения альвеол и капилляров, от толщины их стенок, от наличия сурфактанта и ряда других причин. Для того чтобы оценить все эти факторы, с помощью специальных приборов измеряют диффузионную способность легких, которая в зависимости от возраста и функционального состояния человека может изменяться от 20 до 50 мл О 2 /мин/мм рт. ст.
Вентиляционно-перфузионное отношение. Газообмен в легких происходит только в том случае, если воздух в альвеолах периодически (в каждом дыхательном цикле) обновляется, а через легочные капилляры непрерывно течет кровь. Именно по этой причине остановка дыхания, как и остановка кровообращения, в равной мере означают смерть. Непрерывный ток крови через капилляры называется перфузией , а ритмическое поступление новых порций атмосферного воздуха в альвеолы - вентиляцией. Следует подчеркнуть, что воздух в альвеолах по составу весьма существенно отличается от атмосферного: в альвеолярном воздухе гораздо больше углекислого газа и меньше кислорода. Дело в том, что механическая вентиляция легких не затрагивает наиболее глубоких зон, в которых расположены легочные пузырьки, и там газообмен происходит только благодаря диффузии, а потому несколько замедленно. Тем не менее каждый дыхательный цикл приносит в легкие новые порции кислорода и уносит избыток углекислоты. Скорость перфузии легочной ткани кровью должна точно соответствовать скорости вентиляции, чтобы между этими двумя процессами устанавливалось равновесие, иначе либо кровь будет перенасыщена углекислотой и недонасыщена кислородом, либо, наоборот, углекислота будет вымываться из крови. И то и другое плохо, так как дыхательный центр, расположенный в продолговатом мозге, генерирует импульсы, заставляющие дыхательные мышцы осуществлять вдох и выдох, под воздействием рецепторов, измеряющих содержание СО 2 и О 2 в крови. Если уровень СО 2 в крови падает, дыхание может остановиться; если же растет - начинается одышка, человек ощущает удушье. Соотношение между скоростью кровотока через легочные капилляры и скоростью потока воздуха, вентилирующего легкие, называется вентиляционно-перфузионным отношением (ВПО). От него зависит соотношение концентраций О2 и СО2 в выдыхаемом воздухе. Если прибавка СО2 (по сравнению с атмосферным воздухом) в точности соответствует уменьшению содержания кислорода, то ВПО=1, и это повышенный уровень. В норме ВПО составляет 0,7-0,8, т. е. перфузия должна быть несколько интенсивнее, чем вентиляция. Величину ВПО учитывают при выявлении тех или иных заболеваний бронхолегочной системы и системы кровообращения.
Если сознательно резко активизировать дыхание, делая максимально глубокие и частые вдохи-выдохи, то ВПО превысит 1, а человек вскоре почувствует головокружение и может упасть в обморок - это результат «вымывания» избыточных количеств СО 2 из крови и нарушения кислотно-щелочного гомеостаза. Напротив, если усилием воли задержать дыхание, то ВПО составит менее 0,6 и через несколько десятков секунд человек почувствует удушье и императивный позыв к дыханию. В начале мышечной работы ВПО резко изменяется, сначала снижаясь (усиливается перфузия, так как мышцы, начав сокращаться, выдавливают из своих вен добавочные порции крови), а через 15-20 с стремительно увеличиваясь (активизируется дыхательный центр и возрастает вентиляция). Нормализуется ВПО только через 2-3 мин после начала мышечной работы. В конце мышечной работы все эти процессы протекают в обратном порядке. У детей подобная перенастройка системы кислородного снабжения происходит немного быстрее, чем у взрослых, так как размеры тела и соответственно инерционные характеристики сердца, сосудов, легких, мышц и других участвующих в этой реакции структур у детей существенно меньше.
Тканевый газообмен. Кровь, приносящая к тканям кислород, отдает его (по градиенту концентрации) в тканевую жидкость, а оттуда молекулы О 2 проникают в клетки, где и захватываются митохондриями. Чем интенсивнее происходит этот захват, тем быстрее уменьшается содержание кислорода в тканевой жидкости, тем выше становится градиент между артериальной кровью и тканью, тем быстрее кровь отдает кислород, отсоединяющийся при этом от молекулы гемоглобина, которая служила «транспортным средством» для доставки кислорода. Освободившиеся молекулы гемоглобина могут захватывать молекулы СО2, чтобы нести их к легким и там отдавать альвеолярному воздуху. Кислород, вступая в цикл окислительных реакций в митохондриях, в конечном счете оказывается соединенным либо с водородом (образуется Н 2 О), либо с углеродом (образуется СО 2). В свободном виде кислород в организме практически не существует. Весь образующийся в тканях углекислый газ выводится из организма через легкие. Метаболическая вода также частично испаряется с поверхности легких, но может выводиться, кроме того, с потом и мочой.
Дыхательный коэффициент. Соотношение количеств образовавшегося СО 2 и поглощенного О 2 называется дыхательным коэффициентом (ДК) и зависит от того, какие субстраты окисляются в тканях организма. ДК в выдыхаемом воздухе составляет от 0,65 до 1. По сугубо химическим причинам при окислении жиров ДК=0,65; при окислении белков - около 0,85; при окислении углеводов ДК=1,0. Таким образом, по составу выдыхаемого воздуха можно судить о том, какие вещества используются в настоящий момент для выработки энергии клетками организма. Естественно, обычно ДК принимает какое-то промежуточное значение, чаще всего близкое к 0,85, но это не значит, что окисляются белки; скорее это результат одновременного окисления жиров и углеводов. Величина ДК тесно связана с ВПО, между ними есть почти полное соответствие, если не считать периодов, когда ВПО подвергается резким колебаниям. У детей в покое ДК обычно выше, чем у взрослых, что связано со значительно большим участием углеводов в энергетическом обеспечении организма, особенно деятельности нервных структур.
При мышечной работе ДК также может существенно превышать ВПО, если в энергообеспечении участвуют процессы анаэробного гликолиза. В этом случае гомеостатические механизмы (буферные системы крови) приводят к выбросу из организма добавочного количества СО2, что обусловлено не метаболическими нуждами, а гомеостатическими. Такое добавочное выделение СО2 называют «неметаболическим излишком». Его появление в выдыхаемом воздухе означает, что уровень мышечной нагрузки достиг некоего порога, после которого необходимо подключение анаэробных систем энергопродукции («анаэробный порог»). Дети от 7 до 12 лет обладают более высокими относительными показателями анаэробного порога: у них при такой нагрузке выше частота пульса, легочная вентиляция, скорость кровотока, потребление кислорода и т. п. К 12 годам нагрузка, соответствующая анаэробному порогу, резко снижается, а после 17-18 лет не отличается от соответствующей нагрузки у взрослых. Анаэробный порог - один из важнейших показателей аэробной производительности человека, а также та минимальная нагрузка, которая способна обеспечить достижение тренировочного эффекта.
Внешнее дыхание - это проявления процесса дыхания, которые хорошо заметны без всяких приборов, поскольку воздух входит в воздухоносные пути и выходит из них только благодаря тому, что изменяется форма и объем грудной клетки. Что же заставляет воздух проникать вглубь организма, достигая, в конечном счете, мельчайших легочных пузырьков? В данном случае действует сила, вызванная разницей в давлении внутри грудной клетки и в окружающей атмосфере. Легкие окружены соединительно-тканной оболочкой, которая называется плеврой, причем между легкими и плевральным мешком находится плевральная жидкость, которая служит смазкой и герметиком. Внутриплевральное пространство герметично, не сообщается с соседними полостями и проходящими через грудную клетку пищеварительными и кровеносными трубами. Герметична и вся грудная клетка, отделенная от брюшной полости не только серозной оболочкой, но и крупной кольцевой мышцей - диафрагмой. Поэтому усилия дыхательных мышц, приводящие даже к небольшому увеличению ее объема во время вдоха, обеспечивают достаточно существенное разряжение внутри плевральной полости, и именно под действием этого разряжения воздух входит в ротовую и носовую полость и проникает далее через гортань, трахею, бронхи и бронхиолы в легочную ткань.
Организация дыхательного акта. Три группы мышц участвуют в организации дыхательного акта, т. е. в перемещении стенок грудной клетки и брюшной полости: инспираторные (обеспечивающие вдох) наружные межреберные мышцы; экспираторные (обеспечивающие выдох) внутренние межреберные мышцы и диафрагма, а также мышцы брюшной стенки. Слаженное сокращение этих мышц под управлением дыхательного центра, который расположен в продолговатом мозге, вызывает перемещение ребер несколько вперед и вверх относительно их положения в момент выдоха, грудина приподнимается, а диафрагма вжимается внутрь брюшной полости. Таким образом, общий объем грудной клетки существенно увеличивается, там создается довольно высокое разряжение, и воздух из атмосферы устремляется внутрь легких. В конце вдоха импульсация из дыхательного центра к этим мышцам прекращается, и ребра под силой собственной тяжести, а диафрагма в результате ее расслабления возвращаются в «нейтральное» положение. Объем грудной клетки уменьшается, там повышается давление, и лишний воздух из легких выбрасывается через те же трубки, через которые он входил. Если по каким-то причинам выдох затруднен, то для облегчения этого процесса подключаются экспираторные мышцы. Работают они и в тех случаях, когда дыхание усиливается или ускоряется под воздействием эмоциональных либо физических нагрузок. Работа дыхательных мышц, как и любая другая мышечная работа, требует затрат энергии. Подсчитано, что при спокойном дыхании на эти нужды расходуется чуть больше 1 % потребляемой организмом энергии.
В зависимости от того, связано ли расширение грудной клетки при нормальном дыхании преимущественно с поднятием ребер или уплощением диафрагмы, различают реберный (грудной) и диафрагмальный (брюшной) типы дыхания. При грудном типе дыхания диафрагма смещается пассивно в соответствии с изменением внутригрудного давления. При брюшном типе мощные сокращения диафрагмы сильно смещают органы брюшной полости, поэтому при вдохе живот «выпячивается». Становление типа дыхания происходит в возрасте 5-7 лет, причем у девочек оно становится, как правило, грудным, а у мальчиков - брюшным.
Легочная вентиляция. Чем крупнее организм и чем сильнее работают дыхательные мышцы, тем большее количество воздуха проходит через легкие за каждый дыхательный цикл. Для оценки легочной вентиляции измеряют минутный объем дыхания, т.е. среднее количество воздуха, которое проходит через дыхательные пути за 1 мин. В покое у взрослого человека эта величина составляет 5-6 л/мин. У новорожденного ребенка минутный объем дыхания составляет 650-700 мл/мин, к концу 1 года жизни достигает 2,6-2,7 л/мин, к 6 годам - 3,5 л/мин, в 10 лет - 4,3 л/мин, а у подростков - 4,9 л/мин. При физической нагрузке минутный объем дыхания может очень существенно увеличиваться, достигая у юношей и взрослых 100 л/мин и более.
Частота и глубина дыхания. Дыхательный акт, состоящий из вдоха и выдоха, имеет две основные характеристики - частоту и глубину. Частота - это количество дыхательных актов в минуту. У взрослого человека эта величина обычно составляет 12-15, хотя она может изменяться в широких пределах. У новорожденных частота дыхания во время сна достигает 50-60 в минуту, к годовалому возрасту снижается до 40-50, затем по мере роста происходит постепенное снижение этого показателя. Так, у детей младшего школьного возраста частота дыхания составляет обычно около 25 циклов в минуту, а у подростков - 18-20. Прямо противоположную тенденцию возрастных изменений демонстрирует дыхательный объем, т.е. мера глубины дыхания. Он представляет собой среднее количество воздуха, которое поступает в легкие за каждый дыхательный цикл. У новорожденных он очень мал - всего 30 мл или даже меньше, к годовалому возрасту увеличивается до 70 мл, в 6 лет становится свыше 150 мл, к 10 годам достигает 240 мл, в 14 лет - 300 мл. У взрослого дыхательный объем в покое не превышает 500 мл. Минутный объем дыхания представляет собой произведение дыхательного объема на частоту дыхания.
Если человек выполняет любую физическую нагрузку, ему требуется дополнительное количество кислорода, соответственно увеличивается минутный объем дыхания. У детей до 10 лет это увеличение обеспечивается в основном учащением дыхания, которое может стать в 3-4 раза более частым, чем дыхание в покое, тогда как дыхательный объем увеличивается только в 1,5-2 раза. У подростков, а тем более у взрослых увеличение минутного объема осуществляется главным образом за счет дыхательного объема, который может увеличиться в несколько раз, а частота дыхания обычно не превышает 50-60 циклов в минуту. Считается, что такой тип реакции системы дыхания более экономичен. По различным критериям эффективность и экономичность внешнего дыхания с возрастом существенно увеличивается, достигая максимальных величин у юношей и девушек 18-20 лет. При этом дыхание юношей, как правило, организовано более эффективно, чем у девушек. На эффективность дыхания и его экономичность большое влияние оказывает физическая тренированность, особенно в тех видах спорта, в которых кислородное обеспечение играет решающую роль. Это стайерский бег, лыжи, плавание, гребля, велосипед, теннис и другие виды, связанные с проявлением выносливости.
При выполнении циклической нагрузки ритм дыхания обычно «подстраивается» под ритм сокращения скелетных мышц - это облегчает работу дыхания и делает ее более эффективной. У детей усвоение ритма движений дыхательной мускулатурой происходит инстинктивно без вмешательства сознания, однако учитель может помочь ребенку, что способствует быстрейшей адаптации к такого рода нагрузке.
При выполнении силовой и статической нагрузки наблюдается так называемый феномен Линдгардта - задержка дыхания во время натуживания с последующим увеличением частоты и глубины дыхания после снятия нагрузки. Не рекомендуется использовать тяжелые силовые и статические нагрузки в тренировке и физическом воспитании детей до 13-14 лет, в том числе и по причине незрелости системы дыхания.
Спирограмма. Если на пути воздуха, входящего в легкие и выходящего из них, установить резиновые меха или легкий колокол, погруженный в воду, то благодаря действию дыхательных мышц это приспособление будет увеличивать свой объем при выдохе и уменьшать при вдохе. Если все соединения при этом будут герметичны (для герметизации ротовой полости используют специальный резиновый загубник или маску, надеваемую на лицо), то можно, прикрепив к подвижной части устройства пишущий инструмент, записать все дыхательные движения. Такой прибор, изобретенный еще в XIX в., называется спирограф, а сделанная с его помощью запись - спирограмма (рис. 23). С помощью спирограммы, сделанной на бумажной ленте, можно количественно измерить важнейшие характеристики внешнего дыхания человека. Легочные объемы и емкости. Благодаря спирограмме можно наглядно увидеть и измерить различные легочные объемы и емкости. Объемами в физиологии дыхания принято называть те показатели, которые динамически изменяются в процессе дыхания и характеризуют функциональное состояние системы дыхания. Емкость - это не изменяемый в короткое время резервуар, в рамках которого происходит дыхательный цикл и газообмен. Точкой отсчета для всех легочных объемов и емкостей является уровень спокойного выдоха.
Легочные объемы. В покое дыхательный объем мал по сравнению с общим объемом воздуха в легких. Поэтому человек может как вдохнуть, так и выдохнуть большой дополнительный объем воздуха. Эти объемы носят название соответственно резервный объем вдоха и резервный объем выдоха . Однако даже при самом глубоком выдохе в альвеолах и воздухоносных путях остается некоторое количество воздуха. Это - так называемый остаточный объем, который не измеряется с помощью спирограммы (для его измерения используется достаточно сложная техника и расчеты, применяются инертные газы). У взрослого человека он составляет около 1,5 л, у детей - существенно меньше.
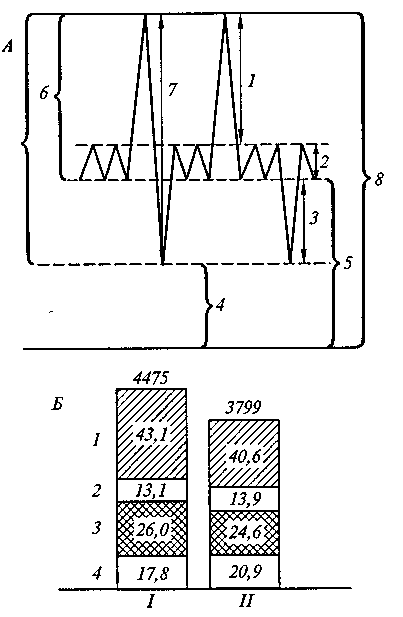
Рис. 23. Спирограмма: емкость легких и ее компоненты
А - схема спирограммы: 1 - резервный объем вдоха; 2 - дыхательный объем; 3 - резервный объем выдоха; 4 -- остаточный объем; 5 - функциональная остаточная емкость; 6 - емкость вдоха; 7 - жизненная емкость; 8 - общая емкость легких; Б - объемы и емкости легких: /- юные спортсмены; // - нетренированные школьники (средний возраст 13 лет) (по А. И.Осипову, 1964). Цифры над столбиками - средние величины общей емкости. Цифры в столбиках - средние величины легочных объемов в процентах от общей емкости; цифры слева от столбиков соответствуют обозначениям на спирограмме
Жизненная емкость легких. Суммарная величина резервного объема вдоха, дыхательного объема и резервного объема выдоха составляет жизненную емкость легких (ЖЕЛ) - один из наиболее важных показателей состояния системы дыхания. Для ее измерения используются разнообразной конструкции спирометры, в которые необходимо сделать максимально глубокий выдох после максимально глубокого вдоха - это и будет ЖЕЛ. ЖЕЛ зависит от размеров тела, а потому и от возраста, а также весьма существенно зависит от функционального состояния и физической тренированности организма человека. У мужчин ЖЕЛ выше, чем у женщин, если ни те, ни другие не занимаются спортом, особенно упражнениями на выносливость. Величина ЖЕЛ существенно различается у людей разного телосложения: у брахиморфных типов она сравнительно мала, а у долихоморфных - очень велика. Принято использовать ЖЕЛ в качестве одного из показателей физического развития детей школьного возраста, а также призывников. Измерить ЖЕЛ можно только при активном и сознательном участии ребенка, поэтому данные о детях до 3-летнего возраста практически отсутствуют.
Для того чтобы понять нейронные процессы, лежащие в основе дыхания, необходимо вспомнить о том, что дыхание - это ритмическое сокращение и расслабление дыхательных мышц. При спокойном дыхании это сокращение мышечной части диафрагмы и прекращение этого сокращения. Явления, происходящие в аппарате внешнего дыхания между началом следующих друг за другом вдохов (инспираций), называются дыхательным циклом. Длительность дыхательного цикла у человека от 3 до 5 секунд. Важно учесть, что дыхательный цикл состоит не из двух, а из трех фаз.
Первая фаза дыхательного цикла - инспирация. В эту фазу возникает возбуждение диафрагмальных мотонейронов. Вслед за инспираторной активностью появляется ток воздуха в легкие. Далее наблюдается повышение активности инспирации, в это время воздух с постоянной скоростью поступает в легкие. Возбуждение постепенно усиливается в течение 1 - 2,5 секунд (при спокойном дыхании) за счет подключения дополнительных мотонейронов. В диафрагмальном нерве содержится около 1000 аксонов мотонейронов, которые возбуждаются не одновременно. Затем возбуждение диафрагмальных мотонейронов резко ослабляется, прекращается инспираторная активность. Это прекращение инспираторной активности, которое является началом экспирации, приводит к расслаблению инспираторных мышц.
Экспирация состоит из двух фаз . Упругие силы, накопившиеся в легких во время инспирации (растяжение эластических компонентов легочной ткани), обеспечивают ток воздуха из легких. Следует обратить внимание на то, что в конце инспирации силы растяжения легких настолько велики, что им требуется противодействие (в противном случае выдох будет слишком быстрым). Инспираторные мышцы на некоторое время остаются сокращенными . Эта фаза называется постинспирация . Постинспираторная активность противодействует упругим силам и делает выдох более медленным и плавным. Во время второй фазы экспирации импульсная активность диафрагмальных мотонейронов отсутствует. При спокойном дыхании не наблюдается и активности мотонейронов экспираторных мышц. При углублении дыхания появляется активность экспираторных нейронов и мышц, и выдох становится активным.
Основными параметрами дыхательного цикла, которые можно измерить, являются: дыхательный объем, общая длительность цикла, длительность инспирации, длительность экспирации. Совокупность параметров, характеризующих объемно - временные отношения дыхательного цикла принято называть паттерном дыхания (от слова pattern - образец, модель).
ФИЗИОЛОГИЯ ДЫХАНИЯ
Дыхание – совокупность процессов, обеспечивающих потребление кислорода и выделение двуокиси углерода в атмосферу. В основе дыхательной функции лежат тканевые окислительно-восстановительные процессы, обеспечивающие обмен энергии в организме.
Сущность дыхания заключается в обеспечении процессов, при помощи которых животные и растительные клетки потребляют кислород, отдают двуокись углерода и переводят энергию в форму, доступную для биологического использования. Поступающий из окружающей среды кислород доставляется к клеткам, где он связывается с углеродом и водородом, которые отщепляются от высокомолекулярных веществ, включенных в цитоплазму. Конечные продукты превращений веществ, удаляемых из организма, двуокись углерода, вода и другие соединения содержат большую часть кислорода, поступающего в организм, остальной кислород входит в состав цитоплазмы. Кислород обеспечивает основные биохимические окислительные процессы, освобождающие энергию, поэтому нормальная жизнь и здоровье животных невозможны при недостаточном снабжении организма кислородом. При прекращении окислительных процессов животные погибают через несколько минут.
В процессе дыхания различают: обмен воздуха между внешней средой и альвеолами (внешнее дыхание или вентиляция легких), перенос газов кровью, потребление кислорода клетками и выделение ими двуокиси углерода (клеточное дыхание).
Эволюция дыхания, У одноклеточных организмов газы непосредственно проникают через оболочку клетки – диффузное дыхание. У низших многоклеточных например червей, низших насекомых, обмен газами происходит через клетки поверхностных покровов – кожное дыхание, У низших позвоночных – рыб, амфибий, пресмыкающихся – уже есть специальные органы дыхания, У рыб органами дыхания служат жабры разнообразного строения – жаберное дыхание, у некоторых рыб, кроме жабр, имеется еще кожное и кишечное дыхание, из кишечной трубки образован плавательный пузырь, клетки которого активно поглощают кислород, например, у щуки – 35, у морского окуня – 88 %.
У большинства насекомых снабжение организма кислородом осуществляется через тончайшие сети ветвей трахеи.
У птиц, как и у рептилий, трахея делится на два бронха, которые, проходя сквозь легкие, открываются в воздушные мешки, Легкие сращены с костальной плеврой. Воздух через легкие поступает через разветвления бронхов и бронхиол в воздухоносные мешки. Наиболее крупные из них расположены в брюшной полости, а более мелкие – в грудной. Все они имеют отростки, проникающие в трубчатые кости конечностей. Диафрагма у птиц, как и у рептилий, отсутствует, Воздухоносные мешки как резервуары воздуха улучшают воздухообмен в легких, поддерживают тело птицы в полете, на воде, способствуют его охлаждению.
ВНЕШНЕЕ ДЫХАНИЕ
У млекопитающих газообмен почти полностью совершается в легких. Через кожу и пищеварительный тракт он осуществляется только в пределах 1 – 2 %. У лошадей во время напряженной работы кожное дыхание возрастает до 8 %.
В филогенезе дыхательного аппарата важное значение имело развитие и совершенствование дыхательной мускулатуры, обеспечивающей постоянную смену воздуха в легких, поэтому респираторные мышцы развиты хорошо,
Дыхание совершается ритмически, что обеспечивает поддержание постоянства напряжения двуокиси углерода (СО 2) концентрации водородных ионов (Н+) и напряжения 0 2 в артериальной крови. Весь процесс газообмена протекает в легочных альвеолах, тесно соприкасающихся с сосудистыми капиллярами и эритроцитами.
Механизм вдоха и выдоха. Процесс дыхания обусловлен движением грудной клетки и растяжением легких. При спокойном дыхании при вдохе (инспирации) вдыхательная мускулатура сокращается, все ребра, поскольку они фиксированы в суставах, описывают дугу кверху и вперед, и грудная клетка расширяется в продольном и поперечном направлениях. Расширению грудной клётки спереди назад способствует и сокращение диафрагмы. При вдохе положение сухожильного центра ее остается неизменным, а увеличиваются лишь мышечные участки. Диафрагма становится конусовидной.
Прекращение вдоха создает предпосылки для выдоха (экспирации): межреберные мышцы расслабляются, и грудная клетка в силу эластичности и собственной тяжести возвращается в исходное положение, а оттесненные назад диафрагмой брюшные внутренности подаются вперед, и купол диафрагмы становится выпуклым. Спадающаяся грудная клетка равномерно сдавливает легкие, выжимая из них воздух. Участие различных мышц в дыхательном акте было выяснено с помощью регистрации их биопотенциалов (электромиография).
Выдох осуществляется обычно пассивно вследствие расслабления указанной мускулатуры. Однако при форсированном выдохе сокращаются внутренние межреберные и задние нижние зубчатые мышцы, а также мышцы живота. Вдох совершается несколько быстрее, чем выдох. У коров соотношение вдоха к выдоху по времени составляет 1:1,2.
Для регистрации дыхательных движений применяют метод реопневмографии. Он заключается в изменении электропроводности тканей, находящихся между двумя электродами: грудь – тазовая конечность. В момент вдоха сопротивление тканей достигает максимума (1 – 2 Ом), а при выдохе – минимума. По данным реопневмограммы можно судить о частоте дыхательных движений, глубине дыхания, длительности вдоха и выдоха, что необходимо для оценки функционального состояния животного.
В механизме вдоха и выдоха большое значение имеет эластическая тяга легких, то есть постоянное стремление легких уменьшить свой объем. Она обусловлена наличием эластических волокон в стенке альвеол и поверхностным натяжением пленки (около 2/3 эластической тяги), покрывающей внутреннюю поверхность альвеол.
Пленка состоит из нерастворимого в воде фосфолипида – сурфактана, который стабилизирует поверхностное натяжение. При вдохе молекулы сурфактана прилегают друг к другу менее плотно, что способствует усилению поверхностного натяжения. При выдохе молекулы прилегают более плотно, что снижает поверхностное натяжение жидкости и препятствует слипанию альвеол и ателектазу (спадению легких). Если бы внутренняя поверхность альвеол была покрыта водным раствором, поверхностное натяжение должно было бы быть в 5 – 8 раз больше. В таких условиях происходило бы полное спадение одних альвеол при перерастяжении других.
Отрицательное давление в плевральной полости. Легкие расположены в геометрически закрытой полости, образованной стенками грудной клетки и диафрагмой. Изнутри грудная полость выстлана плеврой, состоящей из двух листков. Один листок прилегает к грудной клетке, другой – к легким. Между листками имеется щелевидное пространство, или плевральная полость, заполненная плевральной жидкостью.
Грудная клетка в утробном периоде и после рождения растет быстрее легких. Кроме того, плевральные листки обладают большой всасывающей способностью. Поэтому в плевральной полости устанавливается отрицательное давление. Так, в альвеолах легких давление равно атмосферному 760, а в плевральной полости 745 – 754 мм рт. ст. Эти 10 – 30 мм и обеспечивают расширение легких. Если проколоть грудную стенку так, чтобы воздух вошел в плевральную полость, то легкие тут же спадутся (ателектаз). Это произойдет потому, что давление атмосферного воздуха на наружную и внутреннюю поверхность легких сравняется.
Легкие в плевральной полости всегда находятся в несколько растянутом состоянии, но во время вдоха их растяжение резко увеличивается, а при выдохе уменьшается. Это явление хорошо демонстрирует модель, предложенная Дондерсом.
Если подобрать бутыль, по объему соответствующую величине легких, предварительно поместив их в эту бутыль, и вместо дна натянуть резиновую пленку, исполняющую роль диафрагмы, то легкие будут расширяться при каждом оттягивании резинового дна. Соответственно будет изменяться величина отрицательного давления внутри бутыли.
Отрицательное давление можно измерить, если ввести в плевральное пространство инъекционную иглу, соединенную с ртутным манометром. У крупных животных оно достигает при вдохе 30 – 35, а при выдохе уменьшается до 8 – 12 мм рт. ст. Колебания давления при вдохе и вы дохе влияют на движение крови по венам, расположенным в грудной полости. Так как стенки вен легко растяжимы, то отрицательное давление передается на них, что способствует расширению вен, их кровенаполнению и возврату венозной крови в правое предсердие, при вдохе приток крови к сердцу усиливается.
Типы дыхания. У животных различают три типа дыхания: реберный, или грудной, – при вдохе преобладает сокращение наружных межреберных мышц; диафрагмальный, или брюшной – расширение грудной клетки происходит преимущественно за счет сокращения диафрагмы; реберно-брюшной – вдох обеспечивается в равной степени межреберными мышцами, диафрагмой и брюшными мышцами. Последний тип дыхания свойственен сельскохозяйственным животным. Изменение типа дыхания, может свидетельствовать о заболевании органов грудной или брюшной полости. Например, при заболевании органов брюшной полости преобладает реберный тип дыхания, так как животное оберегает больные органы.
Жизненная ёмкость лёгких. В покое выдыхают в среднем 0,З – 0,5, лошади – 5 – 6 л воздуха. Этот объем называют дыхательным воздухом. Сверх данного объёма собаки и овцы могут вдохнуть еще 0,5 – 1, а лошади – 10 – 12 л воздуха. После нормального выдоха животные могут выдохнуть приблизительно такое же количество воздуха.
При нормальном, неглубоком дыхании у животных грудная клетка не расширяется до максимального предела, а находится на некотором оптимальном уровне, при необходимости объем ее может увеличиваться за счет максимального сокращения мышц инспираторов.
Дыхательный, дополнительный и резервный объемы воздуха составляют жизненную емкость легких. У собак она составляет 1,5 – 3 л, у лошадей 26 – 30, у крупного рогатого скота – 30 – 35 л воздуха. При максимальном выдохе в легких еще остается немного воздуха, этот объем называют остаточным. Жизненная емкость легких и остаточный воздух составляют общую емкость легких. Величина жизненной емкости легких может значительно уменьшиться при некоторых заболеваниях, что приводит к нарушению газообмена.
Определение жизненной емкости легких имеет большое значение для выяснения физиологического состояния организма в норме и при патологии. Ее можно определить с помощью специального аппарата, называемого водяным (спирометром). К сожалению, эти способы трудно применимы в производственных условиях. У лабораторных животных жизненную емкость определяют под наркозом, при вдыхании смеси с высоким содержанием СО 2 . Величина наибольшего выдоха примерно соответствует жизненной емкости легких. ЖЕ изменяется в зависимости от возраста, продуктивности, породы и других факторов.
Легочная вентиляция. После спокойного выдоха в легких остается резервный, или остаточный, воздух, называемый также альвеолярным воздухом. Около 70 % вдыхаемого воздуха непосредственно поступает в легкие, остальные 25 – ЗО % участия в газообмене не принимают, так как он остается в верхних дыхательных путях. Объем альвеолярного воздуха у лошадей составляет 22 л. Поскольку при спокойном дыхании лошадь вдыхает 5 л воздуха, из которых в альвеолы поступает только 70 %, или 3,5 л, то при каждом вдохе в альвеолах вентилируется только часть воздуха (3,5:22). Отношение вдыхаемого воздуха к альвеолярному называют коэффициентом легочной вентиляции, а количество воздуха, проходящего через легкие за 1 мин, – минутным объемом легочной вентиляции . Минутный объем – величина переменная, зависимая от частоты дыхания, жизненной емкости легких, интенсивности работы, характера рациона, патологического состояния легких и других факторов.
Воздухоносные пути (гортань, трахея, бронхи, бронхиолы) не принимают непосредственного участия в газообмене, поэтому их называют вредным пространством. Однако они имеют большое значение в процессе дыхания. В слизистой оболочке носовых ходов и верхних дыхательных путях имеются серозно-слизистые клетки и мерцательный эпителий. Слизь улавливает пыль и увлажняет дыхательные пути. Мерцательный эпителий движениями своих волосков способствует удалению слизи с частицами пыли, песка и другими механическими примесями в область носоглотки, откуда она выбрасывается. В верхних дыхательных путях находится множество чувствительных рецепторов, раздражение которых вызывает защитные рефлексы, на пример кашель, чихание, фырканье. Данные рефлексы способствуют выведению из бронхов частиц пыли, корма, микробов, ядовитых веществ, представляющих опасность для организма. Кроме того, вследствие обильного кровоснабжения слизистой оболочки носовых ходов, гортани, трахеи вдыхаемый воздух согревается.
Объем легочной вентиляции несколько меньше количества крови, протекающей через малый круг кровообращения в единицу времени. В области верхушек легких альвеолы вентилируются менее эффективно, чем у основания, прилегающего к диафрагме. Поэтому в области верхушек легких вентиляция относительно преобладает над кровотоком. Наличие вено – артериальных анастомозов и сниженное отношение вентиляции к кровотоку в отдельных частях легких – основная причина более низкого напряжения кислорода и более высокого напряжения двуокиси углерода в артериальной крови по сравнению с парциальным давлением этих газов в альвеолярном воздухе.
Состав вдыхаемого, выдыхаемого и альвеолярного воздуха. Атмосферный воздух содержит 20,82 % кисло рода, 0,03 % двуокиси углерода и 79,03 % азота. В воздухе животноводческих помещений обычно содержится больше двуокиси углерода, водяных паров, аммиака, сероводорода и др. Количество кислорода может быть меньше, чем в атмосферном воздухе.
Выдыхаемый воздух содержит в среднем 16,3 % кислорода, 4 % двуокиси углерода, 79,7 % азота (эти показатели приведены в пересчете на сухой воздух, то есть за вычетом паров воды, которыми насыщен выдыхаемый воздух). Состав выдыхаемого воздуха непостоянен и зависит от интенсивности обмена веществ, объема легочной вентиляции, температуры атмосферного воздуха и др.
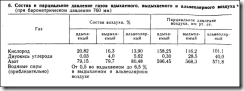 |
Альвеолярный воздух отличается от выдыхаемого большим содержанием двуокиси углерода – 5,62 % и меньшим кислорода – в среднем 14,2 – 14,6, азота – 80,48 % (табл. 6).
Выдыхаемый воздух содержит воздух не только альвеол, но и «вредного пространства», где он имеет такой же состав, как и атмосферный.
Азот в газообмене не участвует, но процентное содержание его во вдыхаемом воздухе несколько ниже, чем в выдыхаемом и альвеолярном. Это объясняется тем, что объем выдыхаемого воздуха несколько меньше, чем вдыхаемого.
Предельно допустимая концентрация двуокиси углерода в скотных дворах, конюшнях, телятниках – 0,25 %; но уже 1 % СО 2 вызывает заметную одышку, и легочная вентиляция увеличивается на 20 %. Содержание двуокиси углерода выше 10% ведет к смерти.
ПЕРЕНОС ГАЗОВ КРОВЬЮ
Кровь служит переносчиком кислорода из альвеолярного воздуха к тканям и двуокиси углерода от тканей тела к легочным альвеолам. Количество газа, растворяющегося в крови, зависит от следующих факторов: состав жидкости, объем и давление газа вне жидкости, температура жидкости и физические свойства данного газа. Для определения степени растворимости газа введен показатель – коэффициент растворимости. Он отражает объем газа, который может раствориться в 1 мл жидкости при температуре О °С и давлении его, равном 760 мм рт. ст. Если над жидкостью находится несколько газов, то каждый из них растворяется соответственно его парциальному давлению.
Парциальное давление – это часть общего давления газовой смеси, приходящегося на долю того или иного газа смеси. Парциальное давление можно узнать, если известны давление газовой смеси и процентный состав данного газа. Если общее давление газовой смеси обозначить Р (мм рт. ст.), а содержание газа – а (в объемных процентах), то парциальное давление газа р можно найти по формуле Дальтона:
Р = р*а/100 за вычетом давления водяного пара – 47 мм рт. ст. Например, при атмосферном давлении воз духа 760 мм рт. ст. парциальное давление кислорода составит примерно 21 % (от 760 мм), т. е. 159 мм рт. ст., азота – 79% (от 760 мм), т. е. 596 мм рт. ст..
Связывание и перенос углекислого газа кровью. В венозной крови содержится 50 – 58 об% двуокиси углерода, причем наибольшая ее часть содержится в плазме и эритроцитах в виде угольной кислоты, около 2,5 об% – в растворенном состоянии и 4 – 5 об % связано с гемоглобином в виде карбогемоглобина.
Образующаяся в тканях двуокись углерода легко диффундирует в кровь сосудистых капилляров большого круга кровообращения, так как напряжение СО 2 в тканях значительно выше его напряжения в артериальной крови. Двуокись углерода, растворяясь в плазме, диффундирует внутрь эритроцитов, где она под влиянием фермента карбоангидразы превращается в угольную кислоту:
Поскольку вся двуокись углерода в эритроцитарной плазме переходит в угольную кислоту, напряжение СО 2 внутри эритроцитов падает до нуля.
В связи с этим в эритроциты постоянно поступают новые порции С0 2 , концентрация ионов НСО 3 - образующихся в эритроцитах, возрастает, и эти ионы начинают диффундировать в плазму. Здесь они присоединяют Na, образуя NaНCO 3 , освобождающийся хлор проникает в эритроциты.
Оксигемоглобин имеет константу диссоциации в 70 раз большую, чем дезоксигемоглобин. Оксигемоглобин – более сильная кислота, чем угольная, а дезоксигемоглобин – более слабая. Поэтому в артериальной крови оксигемоглобин, вытеснивший ионы К+ из бикарбонатов, переносится в виде соли КНЬО 2 В тканевых капиллярах часть КНЬО 2 отдает кислород и превращается в КНЬ. Из него угольная кислота, как более сильная, вытесняет ионы К+.
Таким образом, превращение оксигемоглобина в гемоглобин сопровождается увеличением способности крови связывать двуокись углерода. Это явление получило на звание эффекта Холдена. Гемоглобин служит источником катионов, необходимых для связывания угольной кислоты в форме бикарбонатов. В эритроцитах тканевых капилляров образуется дополнительное количество бикарбоната калия, а также карбогемоглобин, а в плазме крови увеличивается количество бикарбоната натрия.
Бикарбонат с кровью попадает в капилляры малого круга кровообращения, где в эритроцитах происходит обратная реакция, и освобождающаяся двуокись углерода из крови поступает по законам диффузии в альвеолярный воздух.
В легких. обмен газов между альвеолярным воздухом и венозной кровью малого круга кровообращения происходит вследствие разницы парциальных давлений кислорода (102 – 40= мм рт. ст.) и двуокиси углерода (47 – 40= мм рт. ст.). Эта разница вполне достаточна для быстрой диффузии газов на поверхности соприкосновения стенки капилляров с альвеолярным воздухом (рис. 20). двуокись угле – рода диффундирует через альвеолы примерно в 25 раз быстрее кисло рода, поэтому достаточно разности давлений всего в 0,03 мм рт. ст. даже при разнице в давлении 02 в 30 – 35 мм через 1 см альвеол проходит за минуту 6,7 см а через всю поверхность альвеол человека – 6000 см кислорода. Такая скорость и величина диффузии кислорода полностью обеспечивают максимальную интенсивную физическую работу.
Поскольку напряжение двуокиси углерода в тканях достигает 60 – 70 мм рт. ст., а в венозной крови только 46 мм рт. ст., то он диффундирует из тканей в тканевую жидкость и далее в кровь, делая ее венозной.
В газообмене кислорода важное значение имеет активная способность клеток энергично потреблять кислород. Поэтому его напряжение в протоплазме уменьшается и может быть равно нулевому значению. Вследствие этого кислород быстро проникает из крови капилляров большого круга кровообращения, где его напряжение составляет 100 мм рт. ст. и более, в тканевую жидкость, где давление 20 – 37 мм рт. ст.
Ткани потребляют приблизительно 8 об %, или 40 % всего кислорода, содержащегося в артериальной крови, но при усиленной мышечной работе потребление кислорода достигает 50 – 60 %. Количество кислорода, которое получают ткани из общего содержания в артериальной крови, выраженное в процентах, называют Коэффициентом утилизации Кислорода. Его можно вычислить определением разницы в содержании кисло рода в артериальной и венозной крови. Повышению коэффициента утилизации кислорода способствует усиленное образование молочной и угольной кислот при значительной физической работе, а также раскрытие нефункционирующих капилляров в работающей ткани. Утилизации кислорода способствует повышение температуры работающих мышц и усиление ферментативных процессов в клетках.
Клеточное дыхание. Окисление в тканях происходит в клетках и внеклеточном веществе. Оно включает:
1) отдачу водорода, или дегидрирование;
2) присоединение кислорода
3) перенос электрона, или перемену валентности. Окисление начинается с дегидрирования, то есть вначале ферменты дегидразы активируют водород, входящий в состав окисляющегося вещества. Затем к водороду присоединяется кислород, и образуется вода, эта реакция про исходит при участии железосодержащих дыхательных ферментов. В процессах окисления участвуют ферменты пероксидаза и оксидаза. Последняя легко присоединяет молекулярный кислород, при этом образуется перекись. Атом кислорода отщепляется от перекиси и переносится к другим трудно окисляемым веществам при помощи фермента пероксидазы.
В клеточном дыхании очень большую роль играет цитохромная система (цитохром + цитохромоксидаза), дитохромы и флавопротеиды – переносчики водорода. В клеточном дыхании принимают также участие ферменты переносчики аминогрупп, фосфата и др.
Многие ферменты, участвующие в клеточном дыхании, являются производными витаминов группы В. Кроме того, в восстановительно-окислительных процессах в клетках принимает участие аскорбиновая кислота (витамин С). Интенсивность клеточного дыхания зависит от вида животного и его продуктивности.
Взаимосвязь дыхания и кровообращения. Отрицательное давление в плевральной полости обеспечивает венозный возврат крови в правое предсердие. Во время вдоха давление в брюшной полости увеличивается, что также способствует оттоку крови из венозных сосудов и капилляров брюшины и органов брюшной полости. Вследствие присасывающего действия грудной полости кровь выкачивается из большого круга кровообращения и наполняет кровеносные, сосуды малого круга. Кроме того, при повышении кровяного давления рефлекторно тормозятся дыхательные движения вследствие раздражения рецепторов каротидного синуса. Напротив, падение артериального давления вызывает учащение дыхания и изменение его глубины.
Изменение дыхания зависит от частоты раздражения афферентных волокон рецепторов растяжения легких. Особенно много их в области корней легких. Эти так называемые ирритативные рецепторы обладают одновременно свойствами механо- и хеморецепторов. Они раздражаются при достаточно сильных изменениях объема легких. Часть ирритативных рецепторов возбуждается при обычных вдохах и выдохах. Раздражителями этих рецепторов могут быть аммиак, эфир, двуокись серы, табачный дым. Сильное возбуждение ирритативных рецепторов возникает при пневмотораксе, отеке легких, застое крови в малом круге кровообращения и вызывает одышку, кашель.
Асфиксия (удушье) возникает вследствие перерыва в дыхании, зависящего от разных причин; она может быть вызвана нарушением функции дыхательного центра, легких, крови или тканей. В этих случаях ткани не могут использовать кисло род. Например, при воспалении легких альвеолы наполняются тканевой жидкостью, что препятствует оксигенации крови и вызывает асфиксию от недостатка кислорода.
Дыхание плода. В процессе утробного развития газообмен плода происходит через пупочные кровеносные сосуды, тесно контактирующие с кровью матери в плаценте. Эта связь при рождении обрывается, что приводит к резкому понижению напряжения кислорода и быстрому накоплению в крови плода двуокиси углерода и других продуктов обмена. Нейроны дыхательного центра плода возбуждаются, что и вызывает первый вдох. Прекращение дыхания плода через кровь должно происходить быстро, так как медленное пережатие сосудов пуповины не способствует возбуждению дыхательного центра и плод может погибнуть, не сделав вдоха. Существенное значение имеет раздражение рецепторов носоглотки, кожи, мышц и внутренних органов, передающееся по центростремительным нервам в дыхательный центр.
РЕГУЛЯЦИЯ ДЫХАНИЯ
Дыхание – саморегулирующийся процесс, в котором ведущее значение имеет дыхательный центр, расположенный в ретикулярной формации продолговатого мозга, в области дна четвертого мозгового желудочка (Н. А. Миславский, 1885). Он является парным образованием и состоит из скопления нервных клеток, формирующих центры вдоха (инспирация) и выдоха (экспирация), которые регулируют дыхательные движения. Однако точной границы между центрами вдоха и вы доха не существует, имеются лишь участки, где преобладают одни или другие (рис. 21). В верхней части варолиева моста находится центр пневмотаксии, контролирующий деятельность вышеуказанных центров. Во время вдоха он вызывает возбуждение нейронов центра выдоха и таким путем обеспечивает ритмичное чередование (пневмотаксис) вдохов и выдохов
Дыхательная мускулатура и диафрагма получают нервные импульсы из дыхательного центра, поэтому они подчинены ритмическому возбуждению нейронов центра. Мотонейроны, аксоны которых образуют диафрагмальные нервы, находятся в области сегментов, а мотонейроны, отростки которых образуют межреберные нервы, иннервирующие соответствующие межреберные мышцы, расположены в передних рогах грудного отдела спинного мозга.
В коре головного мозга имеется центр, регулирующий и приспосабливающий дыхание к изменяющемуся состоянию организма. Таким образом, дыхательный центр в целом состоит из созвездия нейронов, расположенных на различных этажах центральной нервной системы.
От легких по блуждающим нервам дыхательному центру передаются центростремительные импульсы. Рецепторы, расположенные в легких, и респираторные мышцы ритмически возбуждаются при растяжении и сжатии легких во время вдоха и выдоха. Импульсы, возникающие в легких во время вдоха, поступают в дыхательный центр и тормозят вдох, а при выдохе тормозят выдох. В этом заключается механизм саморегуляции дыхания. После перерезки блуждающего нерва указанная само – регуляция дыхания прекращается, и животные начинают дышать глубоко и очень редко (рис. 22).
* Механизм периодической деятельности дыхательного центра полностью не выяснен. Неизвестна природа торможения инспираторных нейронов при смене вдоха и выдоха. Существует модель механизма дыхательного Центра, включающая два процесса: генератор центрального инспираторного возбуждения (ЦИБ) и механизм выключения инспирации.
Возбудимость дыхательного центра изменяется под влиянием нервных импульсов, поступающих по симпатическим нервам. Если раздражать их, то возбудимость дыхательного центра усиливается, а дыхание учащается. Этим отчасти объясняют изменения ритма дыхания при эмоциях, общем возбуждении, сексуальном поведении, спаривании.
Нейроны дыхательного центра обладают свойством автоматии. Автоматического возбуждения, связанного с обменом веществ в них и накоплением двуокиси углерода. Это было доказано в опытах с изолированным продолговатым мозгом, в котором наблюдали постоянные ритмические колебания биопотенциалов. Если даже перерезать все афферентные нервы, то и тогда в дыхательном центре некоторое время отмечаются ритмические колебания биопотенциалов, однако это не значит, что он может нормально работать без притока импульсов от легких, сокращающихся межреберных мышц и диафрагмы, а также независимо от газового состава притекающей к нему крови. Дыхательный центр функционирует по принципу рефлекса с обратной связью. Недостаток кислорода и накопление двуокиси углерода в крови приводят к возбуждению дыхательного центра и, следовательно, к ускорению ритма дыхания, что обеспечивает постоянство снабжения организма О 2 и удаление из него СО 2 . Двуокись углерода, водородные ионы и состояние гипоксии вызывают усиление и ускорение дыхания, что связано с их воздействием через кровь на нейроны дыхательного центра, а также специальные хеморецепторы, стимулирующие напряжение двуокиси углерода и снижение напряжения кислорода. Они находятся в каротидных синусах и стенке дуги аорты.
Значение газового состава крови в регуляции дыхания было впервые выяснено Л. Фридериком (1871) в опыте с «перекрестным кровообращением» Для этого у двух собак перерезали, а затем соединяли сонные артерии и яремные вены. В результате такого перекрестного соединения голова одной собаки снабжалась кровью из туловища другой собаки и наоборот. Когда у одной из собак зажимали трахею и производили удушье (апное), у другой собаки появлялась резко выраженная одышка (диспное). Это доказывает, что у первой собаки вследствие недостатка кислорода произошло накопление СО 2 в крови и, как следствие, возбуждение дыхательного центра, усиление вентиляции легких.
Дыхательный центр может возбуждаться не только в результате поступления в него крови, насыщен ной двуокисью углерода, но и под влиянием раздражений, идущих из сосудистых рефлексогенных зон, при ходящих в состояние возбуждения при изменении химического состава крови (накопление СО 2 , недостаток кислорода, изменение концентрации водородных ионов).
Различное функциональное состояние организма отражается на частоте и глубине дыхания. Боле вые реакции, холод, повышенная температура воздуха изменяют ритм дыхания. Во время отрыгивания корма жвачные рефлекторно задерживают выдох, а при глотании у многих из них прекращается вдох.
Важное значение в рефлекторном поддержании тонуса дыхательного центра играет слизистая оболочка носовых путей. Струя воздуха, проходящая через слизистую оболочку, раздражает чувствительные окончания тройничного верна и повышает рефлекторно тонус центра.
Приспособление дыхания к изменениям условий внешней среды тесно связано с функцией высших отделов мозга. Так, у собак с удаленной корой полушарий дыхание в покое осуществляется без видимых отклонений, но при попытке сделать даже несколько шагов у них возникает резко выраженная одышка. Усиление дыхания можно выработать рефлекторно, сочетая специфические раздражения хеморецепторов сосудистых рефлексогенных зон с любым внешним раздражителем например световым или звуковым.
В регуляции дыхания большое значение имеет сложная система ин формации высших центров об и нениях парциального давления кислорода и углекислого газа в крови при разнообразных условиях физической работы.
ЗАВИСИМОСТЬ ДЫХАНИЯ ОТ ВОЗРАСТА, ВИДА ЖИВОТНЫХ И РАЗЛИЧНЫХ ФАКТОРОВ ВНЕШНЕИ СРЕДЫ
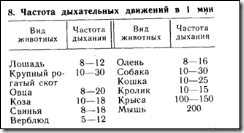 Частота дыхательных движений у разных животных неодинакова и зависит от возраста, вида животных, уровня обмена веществ в организме, а также от температуры окружающей среды, атмосферного давления и не которых других факторов (табл. 8).
У новорожденных животных, как правило, дыхание более частое, но с возрастом частота дыхания постепенно уменьшается. Так, у поросят в первые недели жизни частота дыхания уменьшается с 42 до 31 дыхательного движения, у верблюжат – с 20 – 22 до 10 – 12 (к третьему месяцу), у телят – с 67 при рождении до 22 к 11-му месяцу.
Физическая работа, эмоциональное возбуждение, повышение температуры воздуха, пищеварение учащают дыхание. Во время сна дыхание более редкое. С увеличением частоты дыхания его глубина уменьшается. Частота и глубина дыхания зависят и от интенсивности обмена веществ. У высокопродуктивных коров частота дыхания равна 30, а у средне продуктивных – 15 – 20 дыхательных движений в минуту. У коров – рекордисток частота дыхания, особенно в напряженный период лактации, значительно возрастает, что указывает на приспособление организма к высокому уровню обменных процессов, особенно при высоко концентратном кормлении.
Избыток СО 2 в крови и сдвиги рН в кислую сторону приводят к заметному углублению дыхания. Недостаток кислорода в крови вызывает учащение дыхания. При повышении температуры воздуха с 20 до 40 ос дыхание 6 – месячных телят учащается с 29 до 86 дыхательных движений в минуту, у коров при тех же условиях. 16 до 32.
Чем старше животные, тем ярче выражено влияние высоких температур воздуха, ускоряющих ритм дыхания. Частота дыхания с понижением температуры воздуха уменьшается, а глубина дыхания увеличивается. Это связано с более рациональным расходованием тепла через дыхательные пути и обогреванием вдыхаемого воздуха. Акт вдоха замедляется по сравнению с актом выдоха для уменьшения теплоотдачи.
Изменение дыхания при мышечной работе. Во время интенсивной физической работы вентиляции легких значительно усиливается, частота дыхания нарастает. Эти изменения могут возникнуть рефлекторно даже перед началом работы, но они выражены слабо. В начале напряженной работы мышц количество кислорода оказывается недостаточным для полного удовлетворения возросших потребностей в нем. Вследствие этого образующаяся молочная кислота не может полностью окислиться до Н 2 О и СО 2 , она быстро накапливается в мышцах и в значительном количестве поступает в кровь. Такое состояние называют кислородной задолженностью. Накопившаяся в мышцах молочная кислота (до 100 – 200 мг% вместо 15 – 24 в норме).
Если заставить животное дышать в замкнутом пространстве, например производить вдох и выдох в герметизированную полость (мешок), то содержание двуокиси углерода будет постепенно увеличиваться, а парциальное давление кислорода – уменьшаться. На практике применяют способ так называемого возвратного дыхания, то есть дыхания в мешок, когда поступает воздух, который уже проходил через легкие животного и имеет пониженное содержание кислорода и двуокиси угле – рода. В результате такой тренировки дыхание у лошадей становится более глубоким, а частота сердечных сокращений не увеличивается; они успешно выступают в скачках и соревнованиях по троеборью. Воздействие на организм методом возвратного дыхания активирует центральные регуляторные механизмы глубокого ритмического дыхания в условиях щадящего режима сердечной деятельности (Л. А. Парышева, 1981).
Дыхание при изменении атмосферного давления. Понижение атмосферного давления на высотах 2500 – 3000 м ведет к снижению парциального давления кислорода в альвеолярном воздухе до 55 – 60 мм рт. ст. При дальнейшем подъеме в горы парциальное давление еще больше снижается, соответственно падает и насыщение крови кислородом (гипоксемия), и наступает недостаточное снабжение тканей кислородом (гипоксия); последнее обусловлено недостаточным поступлением кислорода из альвеолярного воздуха в кровь. Такое состояние может возникнуть при низком парциальном давлении кислорода в атмосфере, недостаточной вентиляции легких, например при пневмотораксе или непроходимости верхних дыхательных путей, в случае нарушения функции дыхательного центра при отравлении животных и др.
Анемическая гипоксия обусловлена понижением способности крови связывать кислород, то есть снижением кислородной емкости крови.
Острое кислородное голодание может приводить к потере сознания без предварительных неприятных ощущений. Животные, не адаптироавшиеся к горной местности, тяжело переносят недостаток кислорода в атмосферном воздухе. У них возникает сильная одышка, происходит «вымывание» углекислого газа из организма со сдвигом кислотно-щелочного отношения в щелочную сторону. Возникает газовый алкалоз, возбудимость дыхательного центра падает. Снижение насыщения крови кислородом до 14 – 35 % вызывает спазм кровеносных сосудов и прекращение биоэлектрической активности нейронов головного мозга.
У горных пород овец уменьшение парциального давления кислорода вызывает некоторые изменения в дыхании, однако они хорошо приспособились к условиям гипоксии. У них отмечают повышенное содержание эритроцитов в крови, пониженную чувствительность нейронов головного мозга к недостатку кислорода.
Высокогорные бараны архары и козлы имеют мощные рога, масса которых достигает 30 кг (почти 20 % общей массы животного). Установлено, что в рогах, расположенных на костных стержнях с обширными костномозговыми полостями, вырабатываются дополнительно эритроциты и гемоглобин, необходимые в условиях пониженного парциального давления кислорода на высоте 4 – 5 тыс. м.
Животным, обитающим на больших высотах, обычно свойственно высокое содержание гемоглобина в крови. У собак, выросших на высоте 4500 м, было больше на 40 % гемоглобина крови и на 67 % миоглобина в мышцах, чем у собак равнин.
Если животные поднимаются в горы, то количество гемоглобина в их крови возрастает и увеличивается ее кислородная емкость. Когда животные впервые попадают в условия гипоксии, эритроциты выходят из кровяных депо, например из селезенки, в циркулирующую кровь, а позднее под влиянием гормона эритропоэтина усиливается кроветворение. Синтез гемоглобина возрастает уже в первые 12 ч, а к третьему дню он достигает максимума. В норме эритропоэтин образуется в почках, в юкстагломерулярных клетках. По-видимому, почки реагируют на гипоксию. Тестостерон и пролактин усиливают действие эритропоэтина, а эстрогены ослабляют. Эритропоэтин. воздействует на стволовые клетки костного мозга, побуждая их поглощать железо и продуцировать ретикулоциты.
На больших высотах организм страдает не только от недостатка кислорода, но и от недостатка двуокиси углерода в крови и тканях (гипокапния). Возбудимость дыхательного центра понижается, поэтому дыхание не усиливается настолько, насколько это требуется для удовлетворения потребности организма в кислороде. Если добавить к вдыхаемому воздуху некоторое количество двуокиси углерода (до З%), общее состояние организма при высотной болезни заметно улучшится.
Дыхание при повышенном барометрическом давлении. При спуске в глубину (работа в кессонах, опускание водолазов и др.) давление воздуха может достигать 8 – 10 атм, в таких случаях азот воздуха по ступает в кровь (растворяется) в количестве, пропорциональном давлению. При быстром переходе от высокого давления к низкому азот быстро выделяется из крови, образуя в ней пузырьки, которые могут закупорить кровеносные сосуды (воз душная эмболия). При закупорке сосудов сердца или мозга наступают тяжелые расстройства; возможна даже смерть. Поэтому изменять давление нужно медленно, в таких случаях азот будет постепенно выделяться из крови в воздух легких.
Иногда применяют искусственное повышение давления в специальной барокамере, куда помещают животное. При давлении в 6 атм происходит диффузия кислорода воздуха через кожу в кровь и ткани и насыщение их этим газом (гипербаризация). В таких случаях осуществляются сложные операции при выключенном или искусственном дыхании, так как восстанавливается функция дыхательного центра.
ОСОБЕННОСТИ ДЫХАНИЯ У ПТИЦ
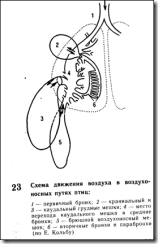 Дыхание у птиц в морфофункциональном отношении отличается от дыхания у млекопитающих животных. У них относительно длинная трахея, легкие прочно прикреплены к ребрам и отсутствует диафрагма. У птиц, кроме легких, имеются хорошо развитые воздухоносные мешки, расположенные в грудной и брюшной полостях и проникающие в трубчатые кости. В воздухоносных мешках газообмен не происходит, но они выполняют роль резервуаров воздуха, облегчают полет птиц, предохраняют их от перегревания.
При вдохе реберная стенка смещается назад и вниз и передняя часть грудобрюшной полости увеличивается. Засасывающийся воздух поступает в легкие и далее по мелким бронхам проникает в воздухоносные мешки. При выдохе грудная клетка сжимается, и воздух из воздухоносных мешков проходит через легкие в обратном направлении. Таким образом, через альвеолы воздух про ходит как во время вдоха, так и вы доха, дважды отдавая кислород в кровь (рис. 23).
Особенно важную роль выполняют воздухоносные мешки во время полета птицы. В этот период грудная клетка остается неподвижной и воздух засасывается воздухоносными мешками при взмахах крыльев.
Частота дыхания у разных видов птиц неодинакова. Во время сна ритм дыхания замедляется.
Частота дыхательных движений у птиц в 1 мин
Куры 20—40
Утки 50—75
Гуси 15—25
Индейки 12 – 14
Голуби 40—60
Легочная вентиляция в полете резко возрастает. Так, в покое у птиц массой 400 г она составляет 7,2, а в полете – 147 л в 1 ч. Частота дыхания в покое равняется 26, в полете – 487 дыхательным движения м в минуту. Частота пульса увеличивается в 2 раза (А. Д. Слоним, 1976).
Птицы чувствительны к недостатку кислорода. У уток сильная одышка возникает при снижении содержания его в воздухе на 1 – 2 %.
Регуляция дыхания у птиц сходна с регуляцией у млекопитающих, но недостаточно изучена. Если у кур перерезать блуждающий нерв, то дыхание резко замедляется, а при раздражении его центрального конца возможна остановка дыхания.
Звуки, издаваемые животными и птицами, – ржание, пение, мычание, лай – представляют собой гамму различных тембров и частот определенной высоты и силы. Каждому виду животных присущи свои, характерные для него звуки голоса. При чем здоровые животные обладают способностью формировать свой, типичный голосовой оттенок, в то время как больные животные обычно утрачивают это свойство, особенно при заболевании голосового аппарата и центральной нервной системы.
Анатомические особенности голосового аппарата объясняются строением гортани: у птиц нет надгортанника, но имеется нижняя гортань у бифуркации трахеи. У собак есть большие голосовые губы, направленные несколько вперед и вниз, что способствует образованию лающих звуков. У свиней голосовые губы разделены на передние, малые и задние, между которыми имеются маленькие кармашки. У крупного рогатого скота голосовые губы перпендикулярны к дну гортани, боковых кармашков нет.
Голос животных – сложная, многозвеньевая рефлекторная реакция. При образовании звуков голосовые связки, содержащие эластические и мышечные волокна, суживаются и при прохождении воздуха вибрируют. Просвет голосовой щели непрерывно изменяется, и в проходящем потоке выдыхаемого воздуха образуются звуковые волны. Возникновение голоса возможно только при сохранении иннервации и нормального тонуса мышц гортани, надгортанника, голосовых связок, а также при хорошо развитых легких и трахее.
Оттенки голоса животных и птиц в значительной степени изменяются в связи с их поведением, а также с возрастом и полом. Например, по оттенку ржания лошади узнают об опасности, призывное ржание кобылы вызывает ответные реакции жеребенка.
ВЗАИМОСВЯЗЬ ОРГАНОВ ДЫХАНИЯ С ДРУГИМИ СИСТЕМАМИ ОРГАНИЗМА
Снабжая организм кислородом и отводя избытки двуокиси углерода, органы дыхания способствуют поддержанию гомеостаза. Сохранение нормальных физиологических констант организма (02, СО и рН артериальной крови) обеспечивается тесным взаимодействием систем дыхания и кровообращения. Насыщение артериальной крови кислородом в начале мышечной нагрузки понижается в результате дискоординации функций дыхательной и сердечно сосудистой систем. Важная роль в установлении соответствия минутных объемов вентиляции и кровообращения отводится корригирующему влиянию коры полушарий мозга.
Органы дыхания анатомически связаны с системой кровообращения, Сердце млекопитающих лежит в ямке на Поверхности легких и частично прикрывается ими. Под влиянием Постоянной вентиляции легочная ткань всегда имеет более низкую температуру, чем сердечная мышца. В силу этого легкие отнимают часть тепла от сердца и охраняют его от Перегревания. дыхание служит важным фактором теплорегуляции Легкие теряют тепловую энергию, согревая вдыхаемый воздух, особенно при низкой температуре. С огромной поверхности лёгких при испарении воды теряется до 10 % всего отдаваемого организмом тепла. Большое значение имеют рефлексы, поступающие от органов носоглотки в тепловой центр; вдыхание холодного воздуха вызывает повышение температуры тела.
Имеется взаимосвязь между органами дыхания и пищеварения – движения грудной клетки и диафрагмы воздействуют на близкорасположенные печень и желудок. Физиологический массаж этих органов улучшает кровообращение в них, ускоряет движение и отток лимфы и желчи, Мышца диафрагмы помогает акту дефекации. Переполненный желудок может затруднять дыхание вследствие значительного давления на диафрагму, что наблюдают при перекорме, Некоторые газы (водород, метан), всасываясь в кровь из кишечника, выделяются с выдыхаемым воздухом.
Кожа принимает участие в газообмене, дыхание через кожу дополняет внутреннее дыхание и способствует обмену двуокиси углерода, который выделяется через кожу. Обмен газов в коже происходит вследствие разницы их парциального давления и зависит от внешних факторов. Он возрастает при высокой температуре воздуха, физической работе, снижении атмосферного давления.
В зонах расположения потовых желез дыхание через кожу более выражено, чем в других местах. Сальные желез несколько ограничивают газообмен, так как они обычно заполнены секретом, который, покрывая кожу, препятствует потреблению кислорода органов дыхания с другими системами организма.
Похожие статьи


